

研究发现肠癌转移的分子开关
美国纪念斯隆-凯特琳癌症中心Ganesh等,通过运用小鼠遗传学、患者来源类器官、单细胞测序、活细胞成像和RNA编辑等技术,发现RNA结合蛋白ZFP36L2是肠道上皮细胞修复和转移共用的应激-可塑性开关的核心调控分子。这种名为ZFP36L2的RNA结合蛋白,打通了细胞应激、肠道损伤再生和肿瘤转移共享的细胞命运重编程通路。(Nature. 2026年8月5日在线版)
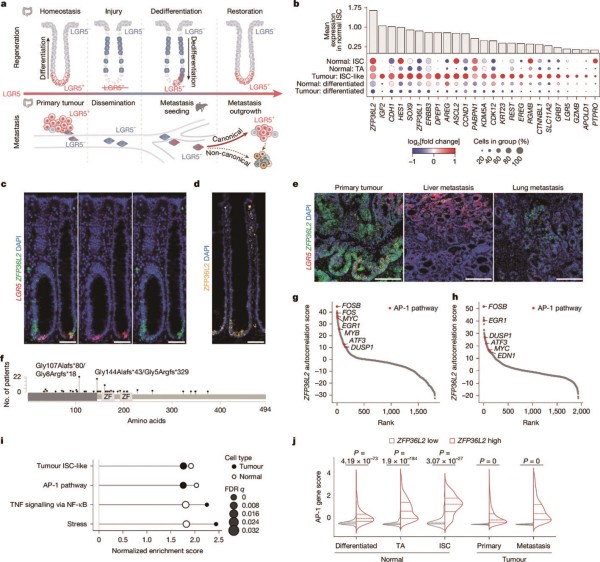
肠道内壁每隔3~5天整体更换一次,靠驻扎在隐窝底部的肠道干细胞不断分化出新细胞。这套系统有个应急预案,一旦干细胞本身因感染、炎症或放化疗,在损伤中被摧毁,已分化成熟的肠上皮细胞可动态地去分化为肠道干细胞状态,驱动上皮再生。这种精妙的生存设计被结直肠癌细胞用来完成远处转移,肿瘤细胞扩散到肝或肺后,靠这种机制重新长出LGR5(肠道干细胞标志物)阳性的转移灶。
研究者比较了同一患者正常肠道、原发肿瘤和转移灶的单细胞测序数据,筛选在类干细胞肿瘤细胞中特异性富集的基因,通过筛选锁定ZFP36L2。ZFP36L2是干细胞样细胞中表达量最高的基因之一,在5%~10%的结直肠癌患者中发生突变,与其共表达最密切的基因正是FOS、MYC、EGR1、ATF3等AP-1应激应答家族成员。
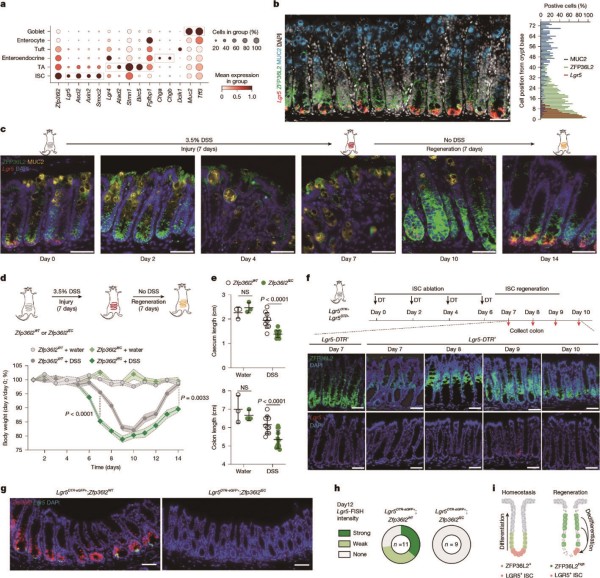
ZFP36L2是调控动态去分化过程、响应应激信号的核心调控因子。在小鼠结肠再生模型中,ZFP36L2消融抑制去分化、ISC基因表达和功能,并损害肠道再生。在人类结直肠癌中,ZFP36L2功能丧失会消除转移性播种和LGR5典型转移的生长,同时促进谱系可塑性和非典型分化为异质细胞状态。
ZFP36L2一旦感知细胞遇到的应激信号,通过形成动态生物分子凝聚体,降解应激相关mRNA、关闭应激反应,进而触发细胞转化为干细胞状态。这个开关一旦因突变失灵,细胞不仅无法正常再生,在肿瘤转移中还会走向与预后较差相关的非经典分化通路。
肠上皮特异性敲除Zfp36l2的小鼠,平时肠道形态正常,干细胞略有减少;但在DSS诱导肠道损伤后,敲除小鼠体重下降更明显、恢复更差,隐窝持续受损、LGR5表达无法回升。另一直接清除LGR5干细胞的模型显示,ZFP36L2先于干细胞状态重建在过渡细胞中被诱导上调,这种时序关系进一步支持它在去分化启动中的作用。
研究者分析了患者来源的转移灶类器官和组织样本,发现携带ZFP36L2突变的转移灶中,LGR5阳性经典干细胞状态的重建受阻,早期转移定植能力显著下降;但这些成功定植的肿瘤细胞并未停止扩散,其后续生长能力也未被削弱,而是被迫通过谱系可塑性转向鳞状细胞样、神经内分泌样等非经典谱系分化以维持恶性生长,形成了正常再生中看不到的异质状态,且与更差的临床预后相关。
研究者利用HyperTRIBE技术,鉴定了ZFP36L2真正结合的mRNA靶标,发现超80%的结合位点位于mRNA的3′非翻译区,富集于保守的UAUUUA基序。结合降解速率测定,研究证实这些转录本正是ZFP36L2介导降解的对象,且主要富集于细胞对压力的响应(如缺氧应答、TNF—NF-κB信号通路,及细胞凋亡/程序性死亡等应激和损伤反应通路)。
该研究回答了为何同一种去分化能力,在损伤修复中是良性的,在转移中却成为帮凶,答案在于同一开关分子的双重作用,在可塑性较低的原发肿瘤中,ZFP36L2缺失只是削弱生长;但在高度依赖可塑性的转移环境中,同样的缺失会把细胞逼向更难对付的非经典状态。
研究发现ZFP36L2突变还广泛存在于胰腺癌、尿路上皮癌和黑色素瘤中,同源蛋白ZFP36L1也参与小细胞肺癌的神经内分泌可塑性调控,提示这套“应激—凝聚体—去分化”链条是跨瘤种保守的机制。若能找到干预ZFP36L2 RNA结合或凝聚体形成的方法,或许能为阻断转移灶干细胞态重建、抑制其向恶性程度更高的状态转化,提供全新的治疗路径。 (编译 王瑾)